- 移动端
TargetMol中国品牌商
12 年
手机商铺
- NaN
- 0
- 0
- 2
- 2
推荐产品
公司新闻/正文
■ 【TargetMol 明星分子】- Melatonin: 连接昼夜节律与细胞命运调控的关键分子
5 人阅读发布时间:2026-09-23 09:48
■ 1. 背景介绍
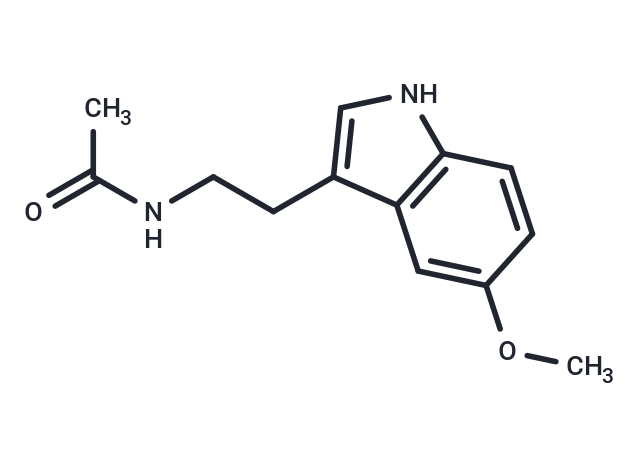
▲Melatonin (T1659),CAS: 73-31-4的化学结构式
Melatonin (T1659),CAS: 73-31-4 是松果体分泌的内源性吲哚胺,既是高亲和力的褪黑素受体激动剂,又具有显著的抗氧化与抗炎活性。膜受体层面上,Melatonin 激活褪黑素受体(GPCR),将“黑暗”信号转导至胞内效应器;典型下游表现为通过 Gi/o 耦联抑制腺苷酸环化酶、降低 cAMP 通路,并重塑 Ca2+ 动力学,进而由 Ca2+/钙调蛋白及 CaMK 等关键组分整合信号,调控与昼夜节律输出及细胞稳态相关的兴奋性与基因表达[1]。同时,Melatonin 可调制 RORβ 相关的核受体转录程序,使其与 ROR 信号特征性的节律、代谢与发育基因网络相衔接;与雌激素/孕激素受体通路的串扰进一步扩展了其对类固醇反应性基因表达的影响,为研究激素—生物钟界面的分子机制提供工具。
在受体依赖机制之外,Melatonin 通过直接影响氧化酶系统与内源性防御展现抗氧化与抗炎作用:其可削弱粒细胞髓过氧化物酶(MPO)驱动的氧化化学反应,并增强细胞抗氧化体系,包括提高谷胱甘肽过氧化物酶活性,从而限制过氧化负荷及脂质/蛋白氧化[2]。这些氧化还原效应反向影响生存通路:通过缓解氧化损伤与线粒体应激,Melatonin 调控凋亡执行事件并维持线粒体完整性;相应地,其作用延伸至自噬与线粒体自噬通路,使细胞器质量控制与能量—氧化还原状态相匹配,维持线粒体稳态并减轻蛋白毒性或氧化胁迫。
从通路视角看,Melatonin 位于褪黑素受体轴、ROR 依赖转录、CaM/CaMK 级联以及凋亡—自噬—线粒体自噬模块的交汇处,并与谷胱甘肽过氧化物酶与 MPO 关键节点功能耦联。其机制表现为:在膜受体端趋向降低 cAMP 并重塑 Ca2+ 通量;在细胞核内通过 RORβ 重定向转录;在氧化还原层面则通过支持抗氧化酶与自由基清除来重塑红氧基调[1,2]。依托这些汇聚机制,Melatonin 能够重设节律输出、再平衡炎症与氧化状态,并微调细胞命运检查点。
由此,Melatonin 被广泛用于节律生物学中对细胞/组织生物钟的定相与相位重置、褪黑素受体药理与 CaMK 下游信号解析、RORβ 主导的转录网络研究;在红氧生物学中用于可控调节 MPO 活性与谷胱甘肽过氧化物酶依赖的防御;在细胞生物学中用于定向影响凋亡、自噬与线粒体自噬,以考察线粒体质量控制、生物能学与应激适应[1,2]。
■ 2. 文献分享
■ 2.1 Melatonin controls cell proliferation and modulates mitochondrial physiology in pancreatic stellate cells
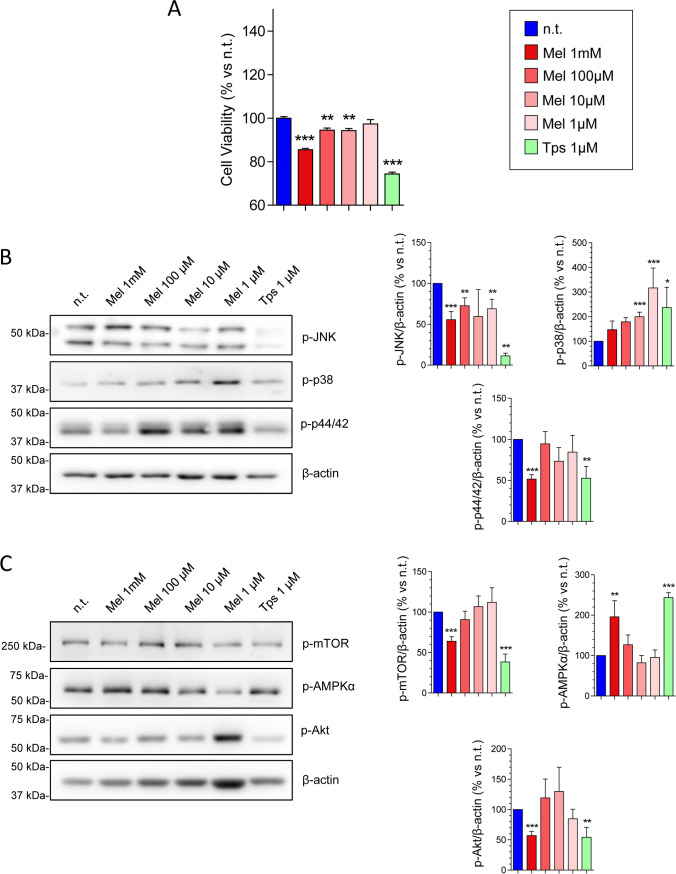
▲梯度褪黑素(Mel)与阳性对照 Tps 对细胞活力及 MAPK、mTOR/AMPK/Akt 通路磷酸化蛋白的调控 (A) 细胞活力检测:1 mM 褪黑素显著抑制细胞存活;1–100 μM 褪黑素无明显毒性,1 μM Tps 明显降低细胞活力,**P<0.01,***P<0.001 vs 未处理组(n.t.)。 (B) Western blot 及定量:褪黑素剂量依赖性下调 p-JNK、p-p44/42,上调 p-p38;Tps 显著抑制三种 MAPK 磷酸化,β-actin 为内参。 (C) 通路蛋白免疫印迹与灰度统计:高浓度褪黑素抑制 p-mTOR、提升 p-AMPKα,促进 Akt 磷酸化;Tps 下调 p-mTOR、p-Akt 并大幅激活 AMPKα,**P<0.01,***P<0.001 vs n.t.。
Melatonin (T1659) 在胰腺星状细胞中被研究,表现出对增殖相关信号与能量代谢的多重调节。在这些细胞中,Melatonin 降低了 c-Jun N 端激酶与 p44/42 的磷酸化水平,同时提高了 p38 的磷酸化。细胞活力在 Melatonin 作用下下降。1 mM 与 100 µM 时,AMPK 的磷酸化升高。1 mM 时蛋白激酶 B 的磷酸化下降,而 100 µM 与 10 µM 时上升。Melatonin 增加线粒体活性氧并降低线粒体膜电位。基础与最大呼吸、氧化磷酸化产生的 ATP、储备能力以及质子漏均在 Melatonin 作用下下降。线粒体呼吸链复合物 I 的表达增加,而在 1 mM 时,Melatonin 降低了线粒体融合蛋白 1 与 2 的表达。1 mM 或 100 µM 下,糖酵解及其能力降低;在 100 µM、10 µM 或 1 µM 时,磷酸果糖激酶-1 和乳酸脱氢酶表达增加,10 µM 或 1 µM 时葡萄糖转运体 1 增加,而 1 mM 时上述三种蛋白的表达均降低。最高浓度下的效应更为显著。[3]
■ 2.2 Particular phosphorylation of PI3K/Akt on Thr308 via PDK-1 and PTEN mediates melatonin's neuroprotective activity after focal cerebral ischemia in mice
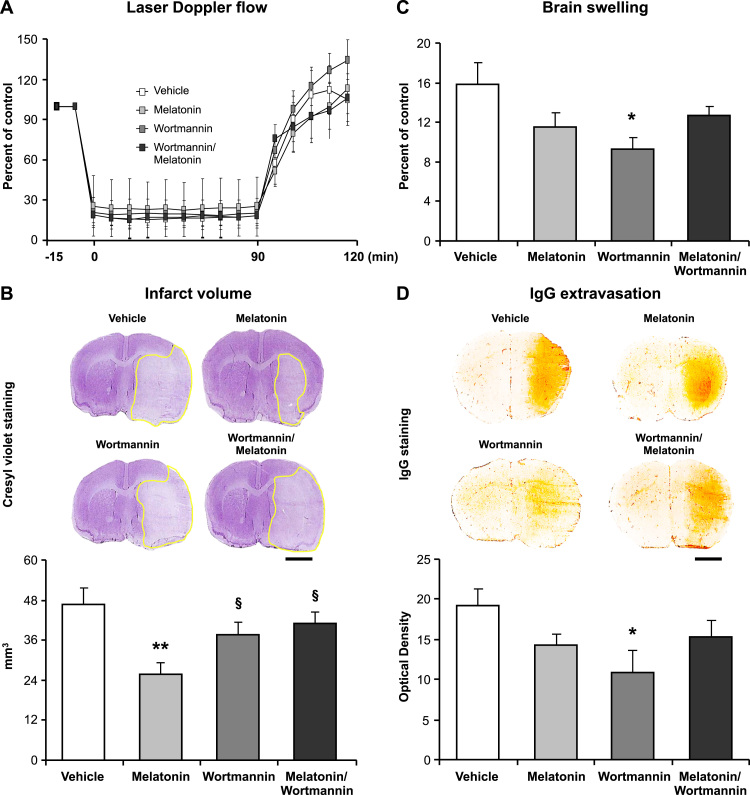
▲ 褪黑素与 Wortmannin 干预对脑缺血大鼠脑血流、梗死体积、脑水肿及血脑屏障渗漏的作用 (A) 激光多普勒实时脑血流量曲线;造模后脑血流骤降,各组随时间逐步恢复,Wortmannin 可逆转褪黑素保护效应。 (B) 相关术语紫染色脑切片及定量:褪黑素显著缩小梗死体积(**P<0.01);联合 Wortmannin 可拮抗该保护作用(§)。 (C) 脑含水量定量脑水肿指标;Wortmannin 组水肿程度显著高于褪黑素组(*P<0.05)。 (D) IgG 渗漏染色反映血脑屏障通透性与光密度定量;褪黑素减轻血管渗漏,Wortmannin 抵消该保护效果(*P<0.05)。
Melatonin (T1659) 在本研究中被报道通过PI3K/Akt通路抑制p53磷酸化,从而预防神经元凋亡。证据显示,在局灶性脑缺血后,Melatonin 处理的动物其p53磷酸化显著下降,而Wortmannin 消除了这一下降。作者进一步指出,Melatonin 利用PI3K/Akt通路在缺血后保护神经元,并给出证据表明,当PI3K/Akt被抑制时,Melatonin 的神经保护效应被逆转;其中由PDK1介导的Akt Thr308位点磷酸化在这一效应中起关键作用。分子层面的检测显示,Melatonin 激活了Akt、PDK1、PTEN、mTOR、AMPKα与RSK1的磷酸化,同时降低了4E-BP1、GSK-3α/β、S6核糖体蛋白以及p53的磷酸化。此外,PRAS40的磷酸化略有升高,而ERK-1/2与Bad的磷酸化在Melatonin 处理后降低。针对Akt活化位点的分析表明,Melatonin 促进了Thr308与Ser473的磷酸化,其中Thr308在平面表面免疫分析与Western blot中均表现为统计学显著升高。以上结果共同勾勒出在缺血损伤背景下,Melatonin 诱导的多靶点信号调控格局,与凋亡信号的减弱和神经元生存相关通路的增强相一致。[4]
■ 2.3 Melatonin, a novel selective ATF-6 inhibitor, induces human hepatoma cell apoptosis through COX-2 downregulation
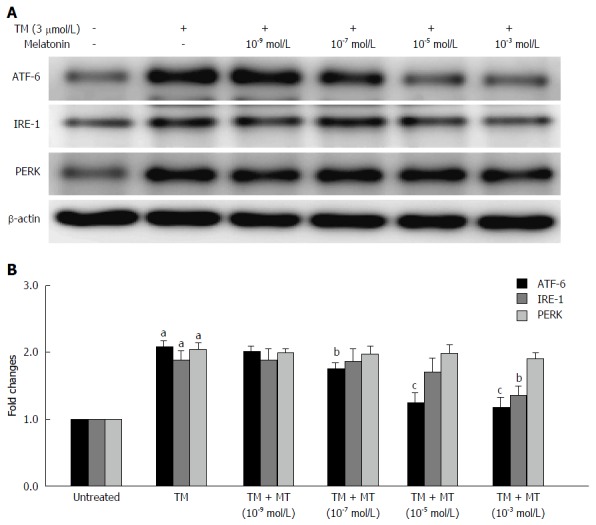
▲度浓度褪黑素对衣霉素(TM)诱导内质网应激通路蛋白 ATF-6、IRE-1、PERK 表达的调控 (A) Western blot 条带:3 μmol/L TM 造模,分别给予 10⁹、10⁷、10⁵、10⁻³ mol/L 褪黑素,β-actin 为内参;TM 显著上调三条内质网应激蛋白,褪黑素呈浓度依赖性逆转该上调。 (B) 蛋白灰度定量倍数变化,不同字母代表组间存在统计学差异;随褪黑素浓度升高,ATF-6、IRE-1 表达逐步降低,PERK 抑制效应偏弱。
Melatonin (T1659) 在内质网应激条件下调控关键的未折叠蛋白反应通路。研究首先证实,Melatonin 选择性阻断 ATF-6,并抑制 COX-2 表达,从而在内质网应激背景下增强肝癌细胞的凋亡。在以 tunicamycin 诱导内质网应激的 HepG2 细胞中,Melatonin 明显提高 CHOP 水平,抑制 COX-2,并降低 Bcl-2/Bax 比值,这些改变共同促进了该条件下 HepG2 细胞的凋亡增加。基于上述机制性证据,研究将 Melatonin 界定为一种新型的选择性 ATF-6 抑制剂,能够使人源肝癌细胞对内质网应激诱发的凋亡更加敏感。整体而言,Melatonin 通过抑制 ATF-6 信号并下调 COX-2,同时促使凋亡相关分子朝有利于细胞死亡的方向变化,从而在内质网应激情境中强化肝癌细胞的凋亡。[5]
■ 3. 结语
Melatonin 主要通过激活膜褪黑素受体(GPCR)调控细胞内信号通路,包括抑制腺苷酸环化酶、降低cAMP水平及重塑Ca2+动力学。同时,它调节核受体RORβ依赖的转录程序,并通过调控粒细胞髓过氧化物酶(MPO)和增强谷胱甘肽过氧化物酶活性展现抗氧化和抗炎作用。文献表明,Melatonin 能调控胰腺星状细胞的增殖与线粒体功能,依靠PI3K/Akt通路介导脑缺血后的神经保护,并通过选择性抑制ATF-6及下调COX-2促进肝癌细胞凋亡。未来研究可进一步探索Melatonin在节律障碍、神经保护、癌症治疗及类固醇激素信号与细胞红氧稳态整合中的应用潜力。
■ 4. Q&A
Q1: Melatonin 主要通过哪些信号机制发挥生物学作用?
A1: Melatonin 激活膜褪黑素受体(GPCR),抑制腺苷酸环化酶降低cAMP信号,重塑Ca2+动力学影响CaM/CaMK通路,调控核受体RORβ依赖的转录,并通过调节MPO和谷胱甘肽过氧化物酶活性增强抗氧化防御。
Q2: 文献中Melatonin如何介导脑缺血后的神经保护?
A2: Melatonin 通过PI3K/Akt通路抑制p53磷酸化,促进由PDK1介导的Akt Thr308位点磷酸化,激活多种生存信号蛋白,降低促凋亡因子的磷酸化,从而减弱缺血损伤中的凋亡信号。
Q3: Melatonin在内质网应激下肝癌细胞凋亡中起什么作用?
A3: Melatonin 作为新型选择性ATF-6抑制剂,抑制COX-2表达,提高促凋亡标志物CHOP水平,降低Bcl-2/Bax比值,增强肝癌细胞在内质网应激条件下的凋亡。
■ 5. 参考文献
[1] Dubocovich ML, Delagrange P, et al. International Union of Basic and Clinical Pharmacology. LXXV. Nomenclature, classification, and pharmacology of G protein-coupled melatonin receptors. Pharmacol Rev. 2010;62(3):343-380.
[2] Reiter RJ, Tan DX, et al. Melatonin as an antioxidant: controversies resolved? J Pineal Res. 2013;54(1):1-15.
[3] Estaras M, Ortiz-Placin C, Castillejo-Rufo A, Fernandez-Bermejo M, Blanco G, Mateos J, et al.. Melatonin controls cell proliferation and modulates mitochondrial physiology in pancreatic stellate cells. Journal of Physiology and Biochemistry. 2022;79(1):235-249.
[4] Kilic U, Caglayan A, Beker M, Gunal M, Caglayan B, Yalcin E, et al.. Particular phosphorylation of PI3K/Akt on Thr308 via PDK-1 and PTEN mediates melatonin's neuroprotective activity after focal cerebral ischemia in mice. Redox Biology. 2017;12():657-665.
[5] Bu L, Yu H, Fan L, Li X, Wang F, Liu J, et al.. Melatonin, a novel selective ATF-6 inhibitor, induces human hepatoma cell apoptosis through COX-2 downregulation. World Journal of Gastroenterology. 2017;23(6):986.